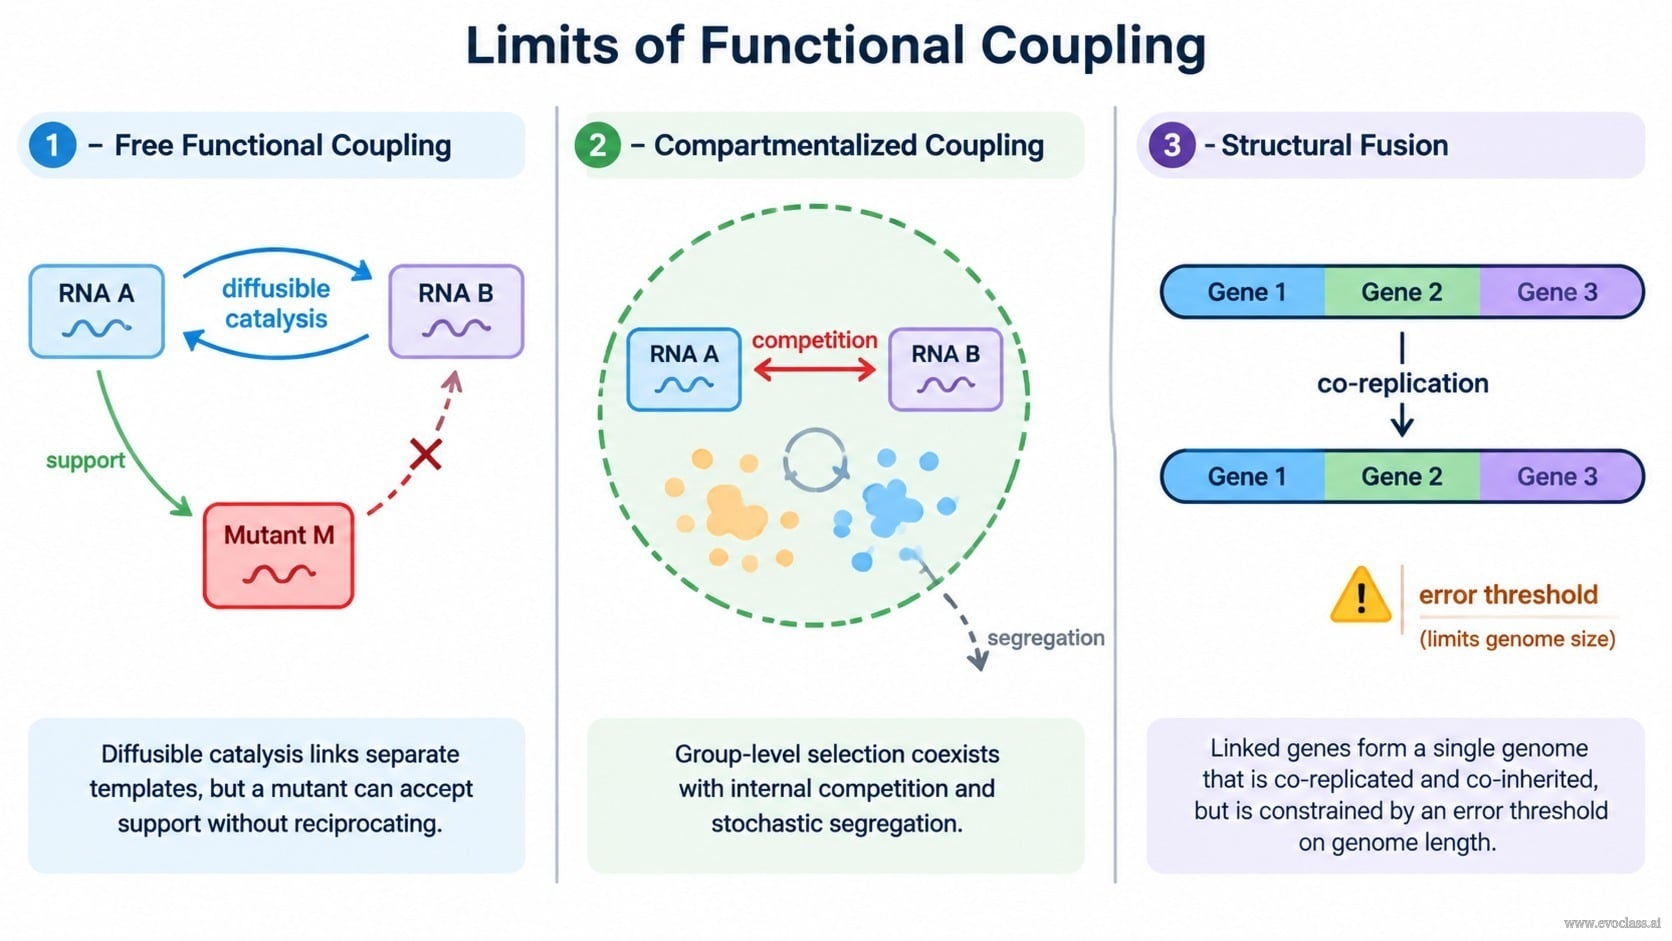
Il primo iperciclo trae il suo vantaggio dall' accoppiamento funzionale: ogni replicatore catalizza la replicazione di un partner e il partner ricambia il favore, così i membri si sostengono a vicenda senza essere fisicamente uniti. È difficile immaginare che la traduzione stessa sia iniziata in modo diverso: un insieme di molecole che cooperano tramite prodotti diffusibili anziché attraverso un unico genoma condiviso.
Cooperazione non è integrazione
Un stabile sistema messaggero richiederebbe che i partner cooperanti siano ereditati insieme come un'unità. L'accoppiamento funzionale non lo garantisce. Le molecole accoppiate restano stampi indipendenti, ciascuno soggetto alla propria replicazione, mutazione, diffusione e diluizione, quindi i benefici della cooperazione non vengono trasmessi in modo affidabile. Ne derivano direttamente quattro limiti.
- Unità competitive separate. Ogni membro ha il proprio tasso di replicazione e di mutazione. Una variante che si copia più velocemente, o che muta in una forma più snella, si diffonde per i propri meriti indipendentemente dal gruppo a cui appartiene.
- Diffusione e diluizione. I prodotti catalitici devono diffondere per raggiungere i loro partner; la stessa diffusione, e il ricambio del mezzo circostante, rimuovono anche membri dall'insieme. L'associazione è statistica, mai garantita.
- Beni pubblici sfruttabili. La catalisi è un beneficio condiviso. Un mutante che accetta supporto ma non ricambia ottiene il vantaggio del gruppo senza pagarne il costo e può invadere il sistema accoppiato.
- Nessuna co-ereditarietà. La replicazione di uno stampo non dice nulla sulla replicazione dei suoi partner. I partner possono essere persi in modo stocastico, quindi la funzione congiunta non è ereditabile come insieme.
Due vie verso la stabilità
Compartimentazione. Racchiudere l'insieme accoppiato in una vescicola o protocellula mantiene le molecole associate nello spazio. Poiché il contenuto viaggia insieme, la selezione può agire sul gruppo come pacchetto anziché su molecole isolate, e la concentrazione locale dei prodotti catalitici aumenta. La compartimentazione è un vero progresso, ma non è una cura: all'interno del compartimento si verificano ancora competizione interna per risorse condivise e segregazione stocastica degli stampi.
Integrazione strutturale. Fondere i geni in un unico polinucleotide o cromosoma collega fisicamente la loro replicazione ed ereditarietà. Ora la replicazione copia l'intero insieme in una volta sola, il genoma diventa l'unità di selezione, e i problemi di diffusione e di sfruttamento vengono in gran parte eliminati perché i partner non possono più essere ereditati separatamente.
Il compromesso e il passo irrisolto
L'integrazione strutturale non è gratuita. Combinare molti geni in una sola molecola ingrandisce il genoma, e un genoma più lungo accumula errori di replicazione più facilmente, quindi si scontra con il limite della soglia di errore su quanta informazione stabile può trasportare. Compartimentazione e integrazione risolvono quindi i problemi di sfruttamento e segregazione, introducendo però nuovi vincoli propri.
Ciò lascia irrisolto il passo centrale: l'accoppiamento funzionale è un requisito plausibile per l'avvio della traduzione, eppure fu alla fine sostituito dalla completa integrazione strutturale, poiché anche i genomi cellulari più primitivi conosciuti sono unità strutturali. Spiegare esattamente come sia avvenuta la transizione dall'accoppiamento all'integrazione — e quali organizzazioni intermedie l'abbiano resa possibile — resta un problema aperto.
Limiti dell'accoppiamento funzionaleTre regimi di cooperazione molecolare a confronto diretto: l'accoppiamento funzionale libero, in cui la catalisi diffusibile collega stampi separati ma un mutante può accettare supporto senza ricambiare; l'accoppiamento compartimentato all'interno di una vescicola, dove la selezione a livello di gruppo coesiste con competizione interna e segregazione stocastica; e la fusione strutturale completa, in cui geni collegati formano un unico genoma co-replicato e co-ereditato ma vincolato da una soglia di errore sulla lunghezza del genoma.